sábado, 14 de octubre de 2023

BEE HAPPY UN NUEVO DISPOSITIVO CONTRA VARROA


Durante  más de 35 años, los  apicultores de todo el mundo han estado haciendo sonar la alarma sobre la desaparición global de colonias enteras de abejas, un eslabón vital en la cadena alimentaria cuya ausencia amenaza el suministro mundial de alimentos.  

Los científicos han determinado que una de las principales causas del trastorno del colapso de colonias (CCD) es el ácaro Varroa, una plaga que se adhiere a las abejas a medida que se desarrollan en sus capullos y se alimenta de ellos, les transmite virus e incluso puede matarlas.


(Cortesía de Piscisgate , CC BY-SA 4.0 /Wikimedia Commons)

La startup israelí ToBe ha desarrollado un dispositivo que libera cantidades precisas de acaricidas en las colmenas para eliminar estos parásitos sin dañar a las abejas.  

Desde principios del siglo XX, el ácaro Varroa se ha extendido desde Asia a colonias de abejas melíferas occidentales (la principal especie utilizada para la polinización de nuestros cultivos) en casi todas partes del mundo. 

Avner Einav, vicepresidente de producto de ToBe, le dice a NoCamels que los ácaros infectan las colmenas con varios tipos de virus y causan entre el 30 y el 60 por ciento de las pérdidas de colonias cada año.

"Estos ácaros no sólo afectan a las abejas", afirma. "Nos afectan a todos". 


HiveMaster de ToBe, insertada en una colmena transparente

El HiveMaster emite pequeños pulsos de gas pesticida que garantiza que el tratamiento se distribuya uniformemente por la colmena. Utiliza sensores y algoritmos inteligentes para comprender la salud de la colonia y determinar la actividad de las abejas antes de continuar.

Por ejemplo, esperará para emitir el acaricida en invierno si detecta que las abejas tienen frío y tienen un metabolismo más lento, lo que debilita su sistema inmunológico. Los apicultores pueden elegir si quieren que HiveMaster emita un acaricida natural o sintético. 

" esta tecnología garantiza que las abejas sigan siendo fuertes y respalden la capacidad de la humanidad para continuar con la agricultura comercial a gran escala".

Una representación de la solución HiveMaster. Un cartucho vertical se llena con un acaricida natural o sintético, y el componente horizontal se inserta en la propia colmena y emite micropulsos de gas

El dispositivo en sí simplemente necesita ser insertado en colmenas artificiales. Una vez dentro, comienza a recopilar y transferir datos a una aplicación complementaria para teléfonos inteligentes, donde los apicultores pueden utilizarlos para tomar mejores decisiones sobre el mantenimiento de sus colonias. 

Menos es más

Incluso los apicultores que deciden rociar ellos mismos acaricidas en sus colmenas (otra forma común de tratamiento) a menudo abusan de estos pesticidas y alteran la colonia debido a las múltiples visitas durante el día. 

Y se ha demostrado que la exposición a altas concentraciones de pesticidas daña a las abejas, particularmente a los intestinos de las larvas, que terminan madurando como adultos más débiles.

“Al fin y al cabo, también es tóxico para las abejas”, afirma Einav. "Los apicultores deben poder tratar los ácaros sin dañar a las abejas, pero es el mayor desafío de la industria".


A principios de este año, ToBe llevó a cabo una prueba piloto con Wonderful Bees, una de las operaciones de apicultura más grandes de Estados Unidos, para comparar la eficacia de su dispositivo con los tratamientos convencionales contra Varroa.

Un grupo de apicultores insertó tiras rociadas con una alta concentración de pesticidas en sus colmenas (una defensa estándar utilizada hoy en día contra el ácaro Varroa), mientras que el otro grupo de apicultores utilizó el dispositivo HiveMaster.


                            Un representante de ToBe realizando una prueba con HiveMaster en España 

En la prueba, las tiras se recubrieron con un gramo del insecticida amitraz, que evita que el ácaro Varroa se propague cuando las abejas entran en contacto con él y entre sí. Por el contrario, The HiveMaster utilizó sólo 0,2 g del pesticida (un 80 por ciento menos de pesticidas) que se dispersó sólo durante momentos específicos.

Después de 15 días, quienes utilizaron HiveMaster descubrieron que el tratamiento tenía una eficacia del 95 por ciento y que había reducido la infestación de Varroa del 4,5 por ciento al 0,2 por ciento. Las tiras recubiertas de pesticidas, por el contrario, tuvieron una eficacia del 30,5 por ciento y sólo redujeron la infestación del 4,6 por ciento al 3,2 por ciento. 


                                          dispositivo  HiveMaster en la piquera de una colmena.

Un término medio

En los últimos años, Israel ha visto el establecimiento de varias empresas de tecnología agrícola con el objetivo de salvar a las abejas. Beewise , por ejemplo, ha desarrollado una colmena autónoma que puede monitorear la salud de las abejas, controlar el medio ambiente e incluso cosechar la miel, mientras que BeeHero utiliza pequeños sensores dentro de la colmena para transmitir información y advertencias en tiempo real sobre la salud de las abejas.

Pero a diferencia de las nuevas empresas que dependen de la tecnología y que siguen siendo demasiado caras para muchos apicultores, ToBe combina métodos de apicultura tradicionales con soluciones holísticas de alta tecnología. 

Según Einav, esto ofrece una alternativa para los apicultores que quieran optimizar sus colonias sin dejar de ser prácticos. 

“Yo también soy apicultor y no quiero que una máquina haga todo mi trabajo”, dice.

ToBe, que se fundó en 2018 y tiene su sede en la ciudad central de Beit Berl, actualmente ofrece su solución como un servicio de suscripción a los apicultores israelíes. Einav dice que pronto se instalará en 7.000 colonias israelíes, alrededor del seis por ciento de las colmenas del país. 


HiveMasters pronto se instalará en 7.000 colonias israelíes, alrededor del seis por ciento de las colmenas del país 

También está en proceso de recibir la aprobación regulatoria en EE. UU., Asia y Europa. 

“Cualquier otra industria relacionada con los animales cuenta ahora con tecnología que permite a los agricultores ser más precisos”, afirma. "Pero en la industria de las abejas, no tanto".

"Y cuando las abejas están sanas, la naturaleza florece".

Fuente: https://nocamels.com/2023/10/bee-happy-new-device-protects-hives-from-colony-killing-mites/?fbclid=IwAR3bb3kRPqOcPLLJGYgSts8i2FXnQx8z7xYS8jo8_FmltaXuTJ-_3AAs82U


lunes, 23 de enero de 2023

EFECTO DEL ACIDO OXÁLICO EN LAS LARVAS DE ABEJAS


Una nota científica sobre el efecto del ácido oxálico en las larvas de abejas melíferas

La aprobación del ácido oxálico como tratamiento para Varroa destructorLa infestación de colmenas de abejas brinda a los apicultores una opción adicional para controlar este devastador parásito y vector de enfermedades, pero los efectos del ácido oxálico en las abejas en desarrollo no se conocen por completo. En este estudio, encontramos que las dosis de ácido oxálico que no son tóxicas para las abejas adultas son tóxicas para las abejas larvarias. Si bien se ha recomendado que el ácido oxálico solo se use durante los períodos sin cría porque no penetra en las coberturas y solo es efectivo para matar ácaros foréticos, es tentador usarlo en otras épocas del año debido a la escasez de opciones de tratamiento efectivas. Saber si el ácido oxálico es tóxico para las larvas y en qué dosis es importante para los apicultores mientras manejan la población de su colonia durante todo el año.


El ácaro Varroa destructor es un importante patógeno de las abejas melíferas y una de las principales causas del colapso de las colonias. Los ácaros han desarrollado resistencia a los tratamientos de primera generación como amitraz, fluvalinato y cumafós (Sammataro et al. 2005 ), lo que llevó a los investigadores a explorar alternativas como el ácido oxálico (OA), que fue aprobado para su uso en colmenas de abejas por la EPA en 2015 . El OA es sumamente tóxico para los ácaros y también es tóxico para las abejas adultas en altas concentraciones (Aliano et al. 2006 ; Martín-Hernández et al. 2007 ; Toomemaa et al. 2010 ). Hay algunos datos que sugieren que el OA es tóxico para las larvas de abejas melíferas (Hatjina y Haristos 2005 ), posiblemente al inducir la muerte celular (Gregorc et al. 2004 ).), pero se desconoce el alcance de la toxicidad de la OA para las larvas. Se recomienda aplicar OA en otoño o invierno cuando los niveles de larvas son bajos, pero muchos apicultores están tan desesperados por reducir la carga de ácaros que lo usan en otras épocas del año (comunicaciones personales). El objetivo de este estudio es determinar las tasas de mortalidad de OA y la concentración letal asociada (LC50) para las larvas de abejas melíferas. Los ensayos de cultivo y toxicidad de larvas se realizaron utilizando un protocolo de documento de orientación desarrollado para exposición repetida (OCDE 2016 ).
Se probaron seis grupos de larvas: un control (0,00 %) y cinco tratamientos de concentraciones crecientes de OA (0,01 %, 0,05 %, 0,1 %, 0,5 % y 1,0 %). En la tabla  I se describe la dosis por larva (μg/larva) asociada a cada concentración. El experimento se replicó 12 veces. Se asignaron dos larvas a cada estadio de edad y concentración de OA. Las larvas se recolectaron del colmenar de Georgia Tech ubicado en el techo de Clough Undergraduate Learning Commons en Atlanta, Georgia (33.775215, − 84.396436) entre mayo y junio de 2018. El día 1 (D1), se usó una herramienta de injerto china para eliminar las larvas. del peine Las larvas se clasificaron en estadios segundo, tercero y cuarto observando el espacio ocupado por la larva en la celda (Human et al. 2013). Las larvas se colocaron en placas estériles de 48 pocillos que contenían 40 μl de dieta artificial compuesta por 50 % p / v de JALEA real (Stakich Inc., Troy, MI) y 50 % de solución de azúcar/levadura hecha de 9 % p / v de glucosa. (VWR, Radnor, PA), 9% p / v de D -fructosa (VWR, Radnor, PA), y 2% p / vbacto-levadura (VWR, Radnor, PA) en agua desionizada. El injerto se restringió a 60 minutos de duración para limitar el estrés de las larvas. Las larvas se cultivaron a 35 °C y 90 % de humedad durante la duración del experimento (D1 a D5). Las larvas no se alimentaron con D2 ya que esto sirvió como un período de aclimatación ambiental. En D3, se comprobó el movimiento de las larvas a través de un microscopio de disección. Las larvas que demostraron movimiento de cualquier tipo se consideraron vivas y continuaron en el experimento. En D3 y D4, todas las larvas vivas fueron alimentadas con dieta artificial con la concentración apropiada de OA para su grupo de tratamiento. El volumen de la dieta varió según el estadio instar para no sofocar a las larvas. Las larvas en el segundo estadio se alimentaron con 20 μl, las larvas del tercer estadio se alimentaron con 50 μl y las larvas del cuarto estadio se alimentaron con 100 μl. Después de 24 h, en D4, se comprobó el movimiento de las larvas como indicador de supervivencia. Todas las larvas supervivientes fueron nuevamente alimentadas con su correspondiente dieta de concentración de OA. El experimento concluyó el D5.


El análisis estadístico se realizó utilizando el software SAS JMP Pro versión 14.1.0. Para la comparación de las curvas de supervivencia se utilizó el método de Kaplan-Meier con log-rank test y datos censurados. Se utilizó la regresión de riesgos proporcionales de Cox para examinar los cocientes de riesgos entre las covariables. La significancia se definió como valores de p < 0,05. La dosis letal mediana (CL50) de la exposición a dosis combinadas se estableció con límites de confianza del 95 % utilizando una regresión generalizada de dosis-respuesta.


En total, se injertaron 423 larvas en D1. En D3, las 412 larvas sobrevivientes continuaron con el estudio. Después de 24 h de tratamiento (D4), todos los grupos instar mostraron una disminución de la supervivencia en cada concentración de OA superior al 0,05 % (Figura  1 ). Las larvas más viejas fueron más resistentes al tratamiento que las larvas más jóvenes. Después de 48 h de tratamiento, las tasas de supervivencia de las larvas en todas las fases de estadio fueron más bajas que a las 24 h y las larvas más viejas tuvieron tasas de supervivencia más altas que las larvas más jóvenes.


Las tasas de mortalidad de los grupos de estadio segundo, tercero y cuarto para las 12 réplicas se muestran en la Tabla I , y la Figura  3 representa la mortalidad predicha de Kaplan-Meier asociada. Si bien se establecieron los efectos de la dosificación en el estadio por concentración, los datos de mortalidad se ajustaron con el modelo de riesgo proporcional de Cox para establecer aún más las relaciones de riesgo de peligro asociadas con los efectos aleatorios de la dosis única y doble en la mortalidad del estadio, el efecto adicional de la concentración de OA, y los efectos binarios de la concentración de OA en cada estadio por dosificación. La Tabla II muestra los resultados que muestran que, si bien la mortalidad en el segundo estadio es más probable en relación con el tercer y cuarto estadio después de la dosis doble (consulte la relación de riesgo), pLos valores no son significativos. Agregando el predictor continuo de los porcentajes de OA y eliminando los efectos de los grupos instar, la mortalidad de las larvas es 1,76 veces mayor al aumentar los porcentajes de OA. Después de eliminar los efectos de la concentración de OA en un momento dado, la mortalidad de las larvas por estadio permanece relativamente constante con valores de p insignificantes. Sin embargo, el aumento de los porcentajes de OA indica una probabilidad 3,99 mayor de mortalidad en todos los estadios. El segundo estadio tiene 2,06 ( p  < 0,0001) veces más probabilidades de morir en relación con el tercer estadio y 1,71 ( p  < 0,0003) veces en relación con el cuarto estadio. Cuadro IIImuestra la concentración letal estimada de OA (LC50) para cada estadio. Las larvas de tercer y cuarto estadio mostraron valores de CL50 más altos en comparación con las larvas de segundo estadio siguiendo las tendencias que se encuentran en la Tabla II.


 Debido a que las larvas están protegidas en las celdas de cría, es poco probable que estén expuestas a la concentración total de 3 a 5 % de OA recomendada por la EPA para el tratamiento de ácaros mediante el método de administración en solución. Los rangos de concentración más bajos de ácido oxálico (0.01–1.0 %) usados ​​en este estudio pueden coincidir más estrechamente con los niveles que experimentan las larvas debido a la adsorción de la matriz de la colonia circundante en respuesta al goteo, rociado, sublimación o transporte del pesticida a través de la colmena mediante el seguimiento de abejas adultas. Después de una única exposición, las larvas de tercer y cuarto estadio tuvieron tasas de supervivencia más altas en cada grupo de tratamiento en comparación con las larvas de segundo estadio, lo que indica que las larvas más viejas tienen una mayor tolerancia al pesticida. Se documentó una disminución significativa en la supervivencia en todas las larvas 48 h después del tratamiento.

Las fuentes de variabilidad en la mortalidad podrían ser el resultado de alimentaciones OA consecutivas, el tiempo y el orden del injerto (grupos de control injertados primero, lo que permite una mayor exposición al medio ambiente), larvas clasificadas como vivas/muertas sin morbilidad intermedia definida o registrada, y sin cambio en la composición de la dieta a medida que las larvas envejecen. Otra consideración es que, si bien los estudios de pesticidas en adultos se informan como aplicaciones orales o dérmicas, no se prueba ninguna distinción cuando las larvas se sumergen en la solución que contiene la concentración de porcentaje de OA prescrita. Se necesita más trabajo para determinar si las tasas de mortalidad se debieron a la exposición repetida de dosis dobles de OA, o simplemente a la presencia de OA en la dieta después de una sola intervención. Ese diseño experimental podría incluir alimentación intermitente, como 24 h y 72 h.

Si bien se ha encontrado que el ácido oxálico en los niveles de tratamiento recomendados por la EPA de 5 ml al 3–5 % de OA en agua azucarada es seguro para las abejas adultas, este estudio muestra que el ácido oxálico es muy tóxico para las larvas de abejas melíferas. El estudio actual proporciona un modelo razonable de exposición de larvas a OA en colmenas tratadas. Los apicultores deben ser conscientes de que el uso de OA para el control de ácaros mientras las larvas están presentes podría tener un efecto negativo aguas abajo sobre el tamaño de la población de la colonia y la capacidad de invernada.


Fuente:

https://link.springer.com/article/10.1007/s13592-019-00650-7?fbclid=IwAR07unAgFCvXmOAm1NzTIX9w-aBw_IeJ5Vcr8rC2cmza_1ikBn_Wdk2dT88

domingo, 16 de enero de 2022

LA ABEJA IBERICA II


Apis mellifera iberiensis , o la  abeja española  (comúnmente mal escrita como  iberica ), es una   subespecie de abeja occidental   originaria de la Península Ibérica. También se encuentra en las Islas Baleares.

El término raza, por su parte, es fundamentalmente un concepto cultural referido a especies de animales domésticos. Aunque son insectos, las abejas melíferas (Apis mellifera, Linneo 1758) se consideran animales domésticos y, en consecuencia, podemos acudir a la zootecnia para describir diferentes razas abejas (Padilla y Flores, 2005). Desde los trabajos de Goetze (1964), las poblaciones de abejas (Apis mellifica L.) de la Península Ibérica han sido consideradas como la raza ibérica (Cornuet y Fresnaye, 1989). En el mismo sentido, Ornosa y Ortiz-Sánchez (2004), en una completa revisión de los Apoidea ibéricos, citan que la subespecie endémica de la Península Ibérica es Apis mellifera iberiensis (Engel 1999), más conocida por su antigua denominación de Apis melifera ibérica.


Figura adaptada de Walberg et al, (2014). Árbol Neighbor-joining construido a partir de distancias basadas en alelos compartidos entre subespecies nativas. Los nodos que conducen a los cuatro grupos geográficos con un 100% de soporte están marcados con un asterisco; la barra de escala proporciona la distancia genética bruta por sitio variable.


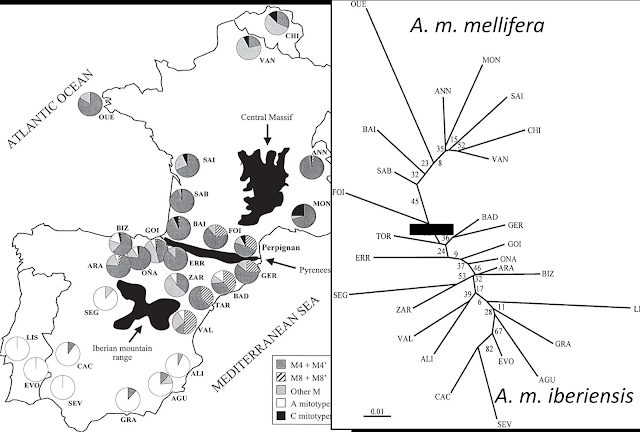
Los datos mitocondriales respaldan la hipótesis de que la Península Ibérica sirvió como refugio glacial para las abejas de Europa occidental. Los autores muestran dos caminos de recolonización post-glacial en los extremos de los Pirineos, y sugieren que el camino occidental fue más significativo en el proceso de recolonización. Es decir, y sin obviar la posibilidad de la existencia de refugios al norte de los Pirineos, el origen filogenético del acervo genético actual de A. m. mellifera estaría en el ancestro de A. m. iberiensis (Miguel et al., 2007).Además, los datos nucleares (microsatélites) sugieren aislamiento por distancia entre las poblaciones del linaje M. Es decir, la diferenciación genética entre colmenares se produce de una forma más o menos gradual, de modo que esa diferenciación es mayor cuanto mayor sea la distancia geográfica entre dos colmenares.

Finalmente, los datos nucleares también proporcionaron una evidencia convincente de que existe una barrera al flujo de genes en los Pirineos. Es decir, que la frontera geográfica entre las subespecies A. m. mellifera y A. m. iberiensis estaría en los Pirineos.Hoy en día la nomenclatura Apis mellifera iberiensis está ampliamente aceptada, tanto en la comunidad científica como en el sector apícola, para denominar a las poblaciones de abejas endémicas distribuidas a lo largo de la Península Ibérica.Las Apis mellifera iberiensis  son muy vigorosas y activas a temperaturas a las que otras subespecies de abejas no salen de la colmena, soportando largos y fríos inviernos. Tienen una longitud de las alas anteriores con un promedio de 9,226 mm y 3,098 mm, mientras que el ancho de la subespecie  Apis mellifera mellifera  es de 9,381 mm y 3,0293 mm respectivamente.


La existencia de lineas morfológicas desde el ecuador hasta el círculo polar a través de Marruecos y España planteó la hipótesis de un origen africano de la “abeja negra”. La morfometría tradicional, las aloenzimas y los datos mitocondriales respaldaron durante años una estrecha relación entre las subespecies A. m. iberiensis y la subespecie del norte de África (linaje A), y apoyaron la hipótesis de Ruttner et al. (1978), según la cual, las subespecies norteafricana, ibérica y mellifera están vinculadas filogenéticamente y forman un único linaje evolutivo de Apis mellifera. Sin embargo, estudios posteriores basados en marcadores del genoma nuclear revelaron que las subespecies africanas y las dos europeas del linaje M (A. m. iberiensis y A. m. mellifera) pertenecen a dos linajes evolutivos bien diferenciados.


Figura adaptada de Miguel et al, 2007.  a) Distribución geográfica de los haplotipos de ADN mitocondrial en las poblaciones estudiadas. Los datos de Bélgica (CHI) y Francia (BAI, SAB, SAI, OUE, VAN, ANN y MON) excepto FOI se obtuvieron de Garnery et al. (1998) Se han incluido los datos de mtDNA de Perpignan, pero esta población no se ha utilizado en el análisis de microsatélites porque no hay datos disponibles. b) Árbol Neighbor-joining de 27 poblaciones ibéricas, francesas y belgas basado en la genética DA matriz de distancia (10 microsatélites).


Figura adaptada de Miguel et al, 2007.

a) Distribución geográfica de los haplotipos de ADN mitocondrial en las poblaciones estudiadas. Los datos de Bélgica (CHI) y Francia (BAI, SAB, SAI, OUE, VAN, ANN y MON) excepto FOI se obtuvieron de Garnery et al. (1998) Se han incluido los datos de mtDNA de Perpignan, pero esta población no se ha utilizado en el análisis de microsatélites porque no hay datos disponibles.
b) Árbol Neighbor-joining de 27 poblaciones ibéricas, francesas y belgas basado en la genética DA matriz de distancia (10 microsatélites).


De modo semejante, los datos morfológicos basados en la morfometría geométrica del ala delantera, resultaron ser altamente consistentes con los datos del genoma nuclear, y corroboraron una marcada divergencia de las subespecies de Europa occidental respecto de las del norte de África (ver Figuras adaptadas de Miguel et al., 2011 y Wallberg et al., 2014). Esto respalda la hipótesis de que la presencia del mitotipo del linaje africano en las poblaciones de abejas melíferas ibéricas es probablemente la consecuencia de introducciones secundarias, con una influencia africana mínima dentro del acervo genético actual de A. m. iberiensis (Garnery et al., 1992, 1998a; Arias et al., 1996; Sheppard et al., 1997; Franck et al., 1998; Canovas et al., 2007; Miguel et al., 2007, 2011).


Mapas de la Península Ibérica que muestran los niveles de diversidad genética de la subespecie A. m. iberiensis. Las líneas negras continuas indican la separación entre la subespecie ibérica y las subespecies A. m. mellifera (al norte de los Pirineos) y A. m. intermissa (en el norte de África). Las líneas negras discontinuas reflejan las diferentes poblaciones de la subespecie ibérica. (A) Gradiente norte-sur de las frecuencias haplotípicas características de los linajes M (azul) y A (rojo) en base a estudios de ADN mitocondrial. La flecha diagonal indica la dirección de dicho gradiente. La flecha roja indica el sentido de la introducción artificial de poblaciones del norte de África. (B) Poblaciones de A. m. iberiensis presentes en la Península Ibérica en base a estudios de ADN nuclear.


Las actividades apícolas, especialmente el comercio de reinas, han alterado la distribución original de las subespecies de abejas melíferas (Apis mellifera) en Europa, y han dado lugar a introducciones extensivas de dos subespecies del linaje evolutivo C de la Europa oriental (A. m. ligustica y A. m. carnica) dentro del rango nativo del linaje M en la Europa Occidental (A. m. mellifera y A. m. iberiensis). Como consecuencia, en la Europa occidental se ha producido reemplazo y flujo de genes entre las poblaciones nativas y comerciales. Este fenómeno se ha producido a diferentes niveles, siendo relativamente bajo en la subespecie A. m. iberiensis en comparación a A. m. mellifera, la cual muestra un reemplazo prácticamente total en países como Alemania, Francia, Dinarmarca o Noruega.La primera descripción de esta abeja de la Península Ibérica se publicó en la revista Bee World , realizada por el hermano adam . F. Ruttner la describió en su libro Biogeografía y taxonomía de las abejas melíferas , pero al igual que varios autores anteriores a él (por ejemplo, Goetze, 1964) equiparó erróneamente a esta abeja con la subespecie propuesta por Skorikov (1929) como  Apis mellifera iberica  (Skorikov, sin embargo, propuso el nombre de una subespecie que se encuentra en el   Cáucaso  y basó el nombre en la antigua designación grecorromana para el Reino de Georgia,  los íbericos caucásicos , que existía allí en la antigüedad). Por lo tanto, el nombre empleado por Ruttner fue un error, dejando a  Apis mellifera iberiensis como el único nombre válido para esta subespecie de abejas melíferas. B. Adam las recogió en un viaje que realizó en 1959 a España y Portugal.

  iberiensis  tiene el tamaño corporal de las subespecies europeas con alas anteriores más estrechas y un abdomen más ancho. Es en su mayoría de color marrón oscuro a negro azabache. La oscuridad se acentúa por el tomento bajo y la escasa vellosidad. Las reinas son de color negro casi uniforme. Son prolíficos y de alta fertilidad controlada por las condiciones ambientales. La membrana de cierre de las células es acuosa. La raza es sensible a algunas enfermedades.


Conducta

Por lo general, no generan múltiples reinas (poliginia) en una colmena determinada en el momento del enjambre. Sus movimientos son rápidos y bastante nerviosos. Exhiben una rápida reacción defensiva, nerviosismo y una propensión a enjambrar. Hacen un uso abundante de propóleos. Una o dos abejas centinelas siempre están presentes en la entrada de la colmena. Si la colonia se ve perturbada, los centinelas emiten una alarma persistente. La colmena ataca cualquier cosa que parezca amenazante durante al menos 24 horas.

Taxonomia

El nombre que a menudo se aplica a esta raza es  Amiberica , un epíteto propuesto originalmente por Skorikov en su monografía de 1929 sobre las abejas melíferas. Autores posteriores a Skorikov asumieron erróneamente que  ibérica  se refería a la Península Ibérica y por lo tanto rápidamente adoptaron el nombre de la raza de abejas que vivían en España y zonas limítrofes. Sin embargo, el nombre  iberica  se basó en una  raza  caucásica de abejas melíferas, el epíteto se refiere a la designación grecorromana  del reino de Georgia establecido en esa región en la antigüedad. El verdadero  A. m. iberica  de Skorikov no tiene nada que ver con la raza de abejas del Mediterráneo occidental, y bajo las reglas de nomenclatura el nombre  iberica no es válido para este linaje de abejas melíferas. El nombre corregido y válido para la raza es  Apis mellifera iberiensis .

En un estudio comparativo de  Amiberiensis  y otras cinco subespecies de  Apis mellifera ,  incluida  Amintermissa ,  A. m. monticola ,  A. m. scutellata ,  A. m. adansonii  y  A. m. capensis  [7] [8]  (Smith, Palopoli, Taylor, Garnery, Cornuet, Solignac, Brown 1991) Los mapas de escisión obtenidos mediante el uso de enzimas de restricción mostraron que la abeja española contiene ADNmt similar a la  intermisa  y también  a la mellifera . Además,  Amintermissa  pertenece a un grupo que se ha demostrado experimentalmente que tiene mtD.NA (ADN mitocondrial) similar, lo que incluye monticola, scuttelata, adansonii y capensis  

En las poblaciones de abejas españolas, se encontró que los haplotipos de mtDNA de cepas de abejas africanas estaban presentes con frecuencia (Smith 1991, Garnery et al. 1995) (Cornuet  et al  1975, 1978, 1982, 1988; Ruttner 1988; Cornuet y Fresnaye 1989; Orante-Bermejos y García-Fernández 1995; Hepburn y Radloff 1996).

Las poblaciones de abejas migratorias formaron las colonias originales de abejas en Europa occidental, aterrizando para eventualmente poblar el continente desde África a través del Estrecho de Gibraltar.


Fuente:

https://rainwaterrunoff.com/the-iberian-honey-bee/?fbclid=IwAR3i7wIAc-7_B0S8TlNb2Hc6oMdrDp30oL9fAnfOwaApryisaFWAt4LFZ80

https://www.erbel.eus/abeja-negra/ 

https://pubmed.ncbi.nlm.nih.gov/25930679/

Historia evolutiva de la abeja melífera ibérica (Apis mellifera iberiensis ): un enfoque del genoma completo

Las abejas en España / La apicultura en España